
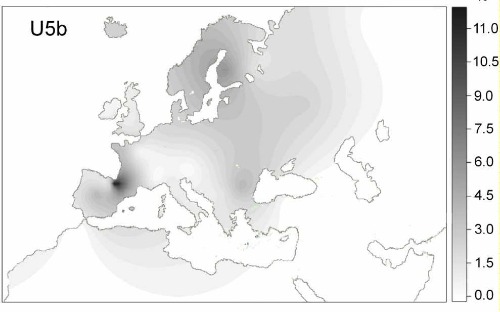
 Villabruna1, es el primer R1b atestiguado de Europa 14.000 años, con ADN materno U5b específico de la zona franco-cantábrica, y el primer paciente en odontología. En 1988 se descubrió una tumba que contenía un esqueleto bien conservado en un abrigo rocoso del noreste de Italia.
Villabruna1 lo llamaron, era un individuo masculino adulto joven, con piel morena y ojos azules de unos 25 años, fue enterrado bajo un refugio rocoso utilizado ocasionalmente por cazadores-recolectores del Paleolítico superior tardío de la región alpina que pertenecía a la cultura epigravetiense. La datación directa AMS de los restos esqueléticos reveló una edad de 14.160 a 13.820 años. El enterramiento se produjo durante las primeras etapas del asentamiento humano en aquel abrigo rocoso.
AJUAR FUNERARIO
En el lado izquierdo del esqueleto había seis ajuares funerarios, que probablemente estaban contenidos en una bolsa. Los artefactos pueden describirse como el equipo típico de un cazador paleolítico: un cuchillo de pedernal, un núcleo de pedernal, otra piedra a modo de martillo, una hoja de pedernal, una punta de hueso y una BOLITA DE OCRE ROJO y propóleo (una masa resinosa con propiedades antibióticas producida por las abejas, efectos antivirales y antifúngicos). Sobre la tumba se colocaron varias piedras calizas, algunas de las cuales estaban decoradas.
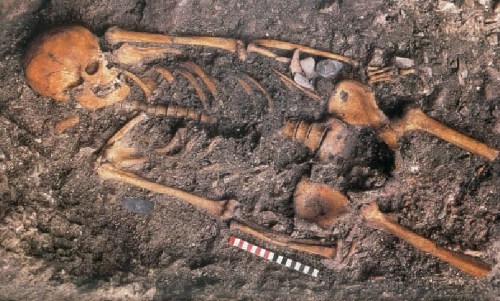
El pozo se llenó de tierra y se cubrió con piedras recogidas de arroyos cercanos. Algunas tienen zonas teñidas de ocre rojo y al menos dos de ellas (núms. 1 y 2) presentan motivos bien definidos con dibujos en ocre rojo. Una tercera piedra pintada fue encontrada en la misma capa fuera del área de enterramiento. La pared del refugio, alrededor de la tumba, estaba pintada con bandas verticales rojas, de las que ahora sólo se ven débiles rastros, marcas similares a las aparecidas en cuevas ibéricas de Almería o en Lascaux.
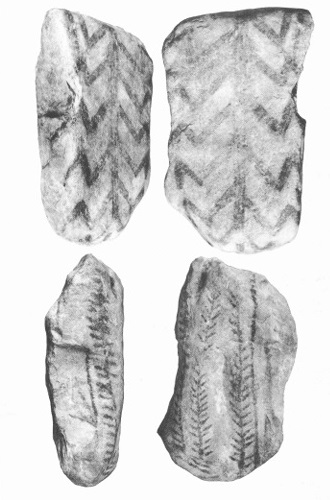
(imagen Las piedras nº 1 abajo y nº 2 arriba, están decoradas con ocre rojo)
La piedra nº 1, de forma paralelepípeda, estaba situada a 12 cm al oeste del cráneo. Presenta, en las cuatro caras más anchas, bandas longitudinales de longitud variable, pintadas de ocre rojo.
La piedra nº 2, de forma paralelepípeda, se ubicó en correspondencia con la cadera derecha en conexión con las demás piedras del techo. Las dos caras más importantes, planas, corresponden a superficies de capas. La cara mayor vuelta hacia arriba y una de las caras laterales muestran un patrón pintado, totalmente visible cuando se insertó la piedra en la tapa. El patrón presenta una simetría bilateral, modificada sólo en una zona, donde la morfología del soporte habría determinado la invasión de la otra cara lateral, no visible por estar respaldada por otra piedra de la cubierta. Esto sugiere que la propia piedra fue pintada según su situación entre las demás piedras de la portada, o después de su colocación entre ellas. Por tanto, existe un estrecho vínculo entre el entierro y el motivo pintado. El lado pintado más grande muestra un fondo rojo violeta, sobre el que destaca un motivo pintado de color rojo ladrillo con contornos claros. El patrón está formado por una franja ancha de aproximadamente 16 a 13 mm, formada por tres líneas paralelas, que atraviesa la superficie longitudinalmente dividiéndola en dos partes iguales. De esta banda axial destacan seis pares de líneas quebradas, dispuestas simétricamente.
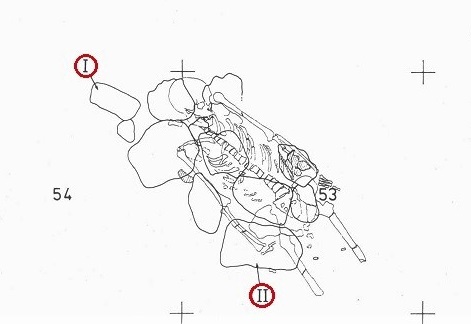
Fig. La posición de las piedras que cubrían el pozo en relación al esqueleto, las piedras decorado con motivos (I y II).
Las tres piedras pintadas del abrigo Villabruna constituyen un nuevo conjunto para el arte paleolítico. El motivo de la piedra n.° 1 y el motivo de púas de la piedra n.° 3 encuentran ecos en el arte aziliano (PlETTE, 1986; COURAUD, 1985, pl. 1,2,3 y 4), mientras que el motivo alberiforme de la piedra n.° 3. se puede comparar con ciertos motivos pintados o grabados de la cueva de Parpallo en Valencia (PERlCOT, 1942, pág. 246 y fig. 646). En la producción del Paleolítico superior europeo no existen, sin embargo, términos de comparación para el motivo pintado sobre piedra n.° 2, que por el contrario presenta afinidades con los hiperantrópicos de la parte centro-sur de la Península Ibérica. La piedra pintada nº 2, colocada sobre el entierro tiene un motivo que probablemente sea una representación esquemática del cazador enterrado.
El análisis del esqueleto indica que Villabruna1 era alto para la época y se caracterizaba por proporciones corporales más lineales que las de sus contemporáneos. El análisis estadístico bivariado y multivariado muestra que Villabruna 1 tenía proporciones corporales intermedias entre las de EUP y LUP y, en general, muy similares al patrón comúnmente mostrado por las poblaciones recientes del norte de África. Estos datos sugieren que, si bien Villabruna1 conserva una condición más ancestral indicativa de origen africano que sus contemporáneos, este ejemplar encaja bien en el proceso micro evolutivo que afectó a las poblaciones europeas del Paleolítico Superior y que condujo a la adquisición progresiva de proporciones corporales típicas de las regiones templadas.
Los análisis estadísticos multivariados de las características craneofaciales sitúan a Villabruna1 en el morfocomplejo del período y, curiosamente, cerca de un espécimen geográfica y cronológicamente cercano. Se sugiere afinidad genética entre poblaciones paleo mesolíticas de la región alpina. Estas sorprendentes similitudes entre Villabruna1 y Le Bichon1 indican afinidad genética entre ellos.
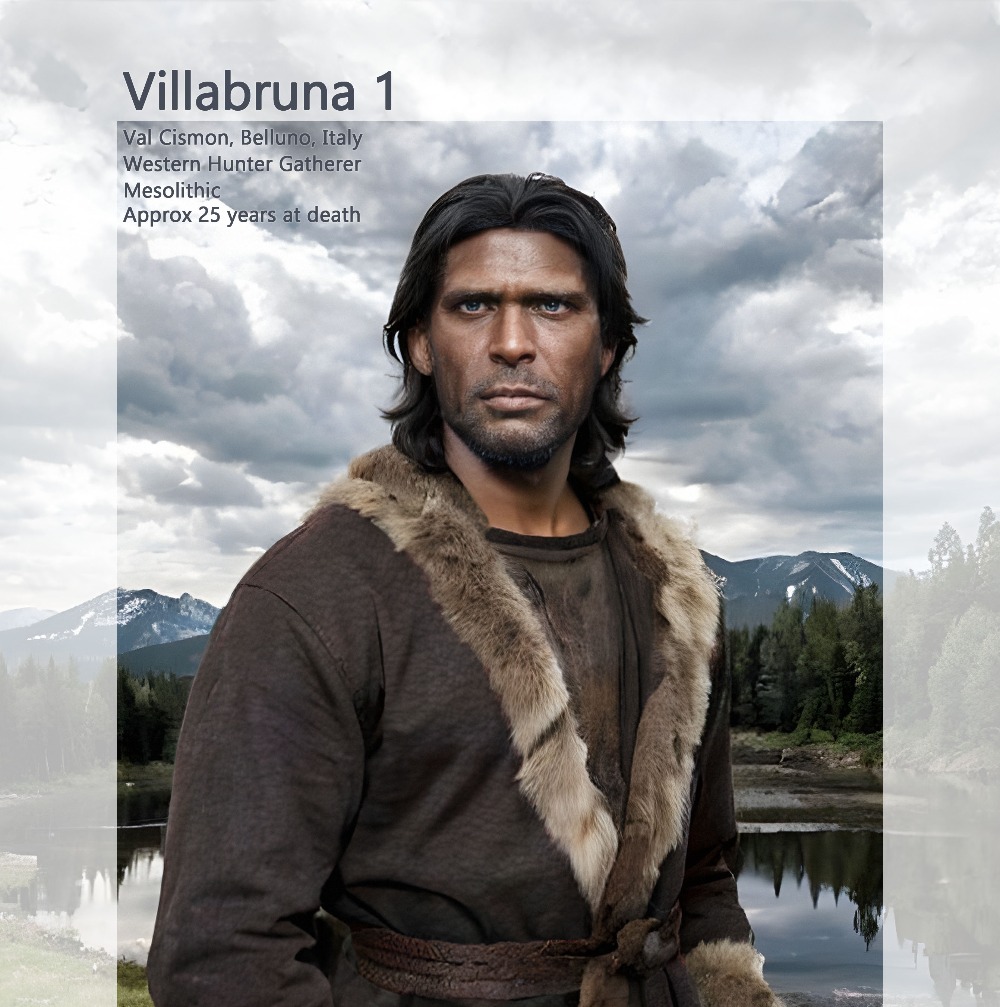
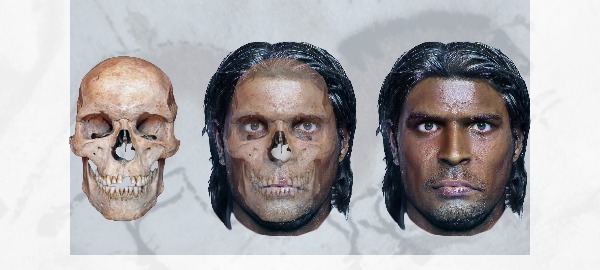
El origen del grupo de Villabruna probablemente esté en algún lugar cercano a los Balcanes . El grupo de Villabruna (que está asociado con el Epigravetiense y otras culturas arqueológicas relacionadas) se había expandido hacia las penínsulas italiana e ibérica hace aproximadamente 19.000 años, y el grupo WHG se expandió posteriormente por Europa occidental a fines del Pleistoceno hace unos 14-12.000 años, reemplazando en gran medida a los pueblos magdalenienses que anteriormente dominaban la región.
DNA (novedades 2025)
Reich y Lazaridis cita indirectamente el contexto genético de Villabruna en su publicación de febrero de 2025, The genetic origin of the Indo-Europeans. El genoma de Villabruna y todo su clúster genético han sido reanalizados de forma exhaustiva mediante las herramientas estadísticas de última generación. Antes se usaba a Villabruna de forma estática como una fuente o un grupo externo (outgroup) fijo. Ahora, con las nuevas herramientas estadísticas, los programas de Lazaridis hacen "competir" simultáneamente decenas de modelos de mezclas y combinaciones de grupos de referencia (Right lists). Al aplicar este filtro matemático, el genoma de Villabruna actúa como el validador definitivo. Estas herramientas de Lazaridis han mapeado con precisión milimétrica cómo el "componente Villabruna" (Cazador-Recolector Occidental/WHG) se fue diluyendo y reintroduciendo en los linajes de la Edad del Bronce. El software ha podido aislar qué porcentaje exacto de la herencia tipo Villabruna en las poblaciones occidentales venía del SUSTRATO LOCAL y cuánto se había filtrado previamente en Cazadores Orientales de las llanuras ucranianas (el llamado gradiente o clina del Dniéper).
El individuo de Villabruna es el espécimen de referencia (proxy) que define genéticamente al llamado "Clúster Villabruna" o Cazadores-Recolectores Occidentales (Western Hunter-Gatherers). Los árboles filogenéticos del macroestudio de Reich y Lazaridis (2025) entienden que los pueblos prehistóricos de Eurasia no aparecieron de la nada, sino que forman parte de una red interconectada donde el linaje de Villabruna aportó el sustrato genético básico que luego se mezcló con los agricultores neolíticos y los pastores esteparios por todo el continente europeo.
En el software de genética de poblaciones qpAdm, las poblaciones se dividen entre el grupo de prueba (Left o fuente proximal) y el grupo de referencia externo (Right u grupo externo). Para desenterrar el origen de los Yamnaya (el foco del estudio de Lazaridis de 2025), Villabruna se coloca obligatoriamente en la lista de poblaciones Right. Al hacer esto, el software calcula estadísticas f4 para comprobar si las fuentes propuestas (como el eje Cáucaso-Bajo Volga, CLV) comparten una deriva genética asimétrica con Europa occidental. El modelo propuesto comparte demasiada afinidad inesperada con Villabruna, el modelo matemático falla (da un p-value bajo) y se rechaza por no ser un grupo “externo”.
Cuando se modela el genoma de poblaciones posteriores (como las de la Edad del Bronce en Europa Central u Occidental), Villabruna se utiliza como una fuente pura “proximal” junto con los Agricultores Neolíticos de Anatolia (ANf) y los Pastores de las Estepas (Yamnaya) para ver cuánta de la población mesolítica original sobrevivió localmente. Al realizar análisis de mezclas de tres vías (3-way admixture) en herramientas como G25 o en desgloses distales de qpAdm, las poblaciones de la Edad del Bronce muestran una retención de Cazador-Recolector Occidental (WHG/Villabruna) muy heterogénea según la geografía:
| Región / Población (Edad Bronce) | Porcentaje estimado de WHG/Villabruna |
| Europa Báltica / Nórdica | 25% - 40% (El pico más alto de Europa) |
| Europa Central (Cultura Unetice) | 15% - 22% |
| Península Ibérica (Bronce Pleno) | 18% - 25% (Resurgimiento local) |
| Estepas Euroasiáticas (Yamnaya) | 0% - 6% (Afinidad muy baja) |
El fenómeno del "Resurgimiento WHG" en Iberia
El caso de la península ibérica (relevante para contextos como el del Alto de la Cruz) es especialmente interesante para los analistas de G25:
- Efecto Dilución y Rebote: Durante el Neolítico inicial, la llegada de agricultores de Anatolia redujo el porcentaje de cazadores-recolectores locales (tipo Villabruna). Sin embargo, durante el Neolítico Final y la Edad del Bronce, se dio un fenómeno conocido como "resurgimiento WHG": las poblaciones locales de agricultores se mezclaron gradualmente con focos de cazadores-recolectores remotos que habían sobrevivido.
- El perfil final: Cuando los migrantes de las estepas entraron en Iberia trayendo su propio ADN (que ya combinaba genética de Villabruna/WHG, cazadores orientales y del Cáucaso), se fusionaron con unos locales que ya tenían una tasa de Villabruna/WHG bastante elevada (cercana al 20-25%). Por eso, las calculadoras G25 modernas marcan que los individuos del Bronce y Hierro ibérico retienen un componente neto sustancial de cazador-recolector de Europa occidental.
DNA paterno
Portaba el haplogrupo de ADN-Y paterno tipo R1b1a-L754 (negativo P297). Este es el único y primer genoma encontrado de R-L754, es también el primer individuo europeo occidental conocido en portar R1b. A día de hoy R-L754 lo contienen la gran mayoría de R1b.
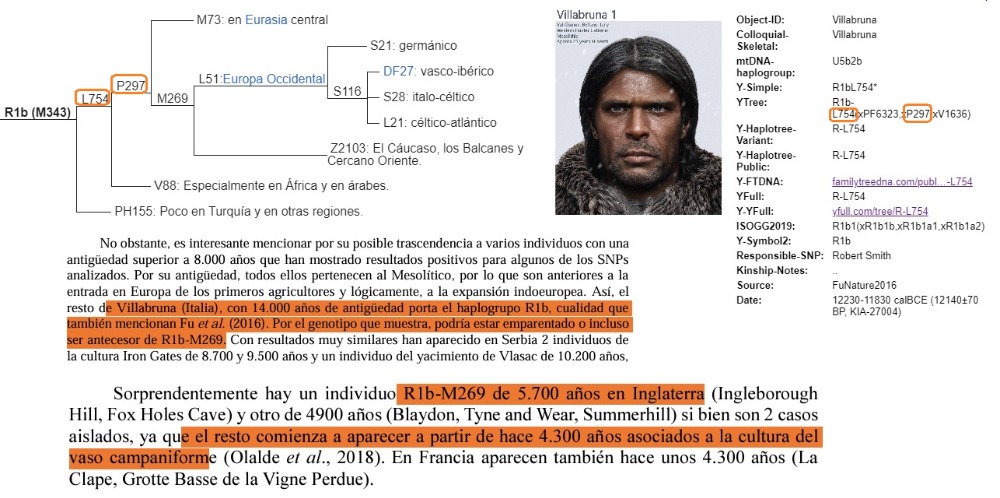
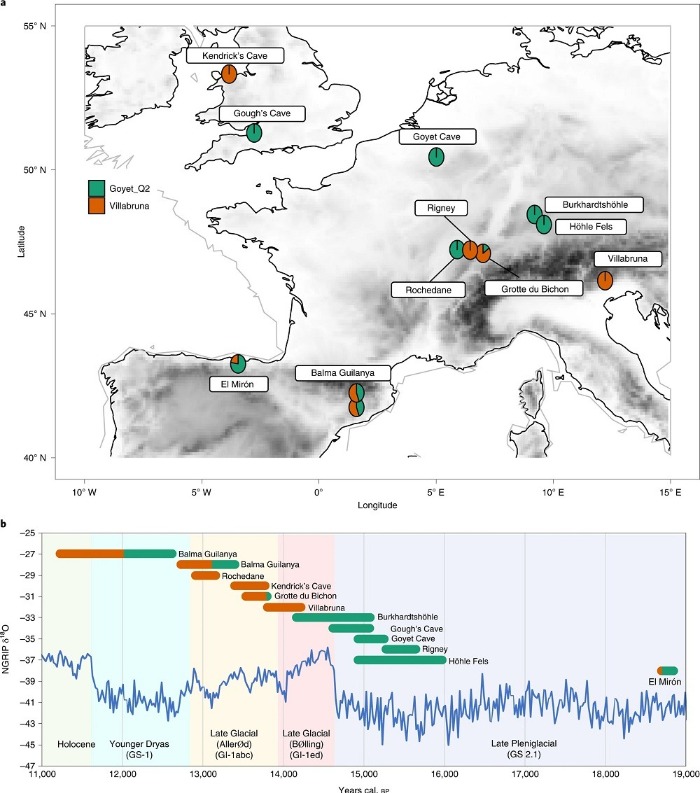
R1b es más frecuente en Europa occidental hoy en día y tiene un origen propuesto y una distribución geográfica actual muy similar al haplogrupo H del ADNmt (Myres et al., 2011). Durante varios miles de años, los Villabruna estuvieron limitados al sur de Europa. Luego, hace 14.000 años, cruzaron los Alpes y se encontraron con el pueblo GoyetQ2 al norte. Surgió una nueva población, su ascendencia tres partes Villabruna y una parte GoyetQ2.
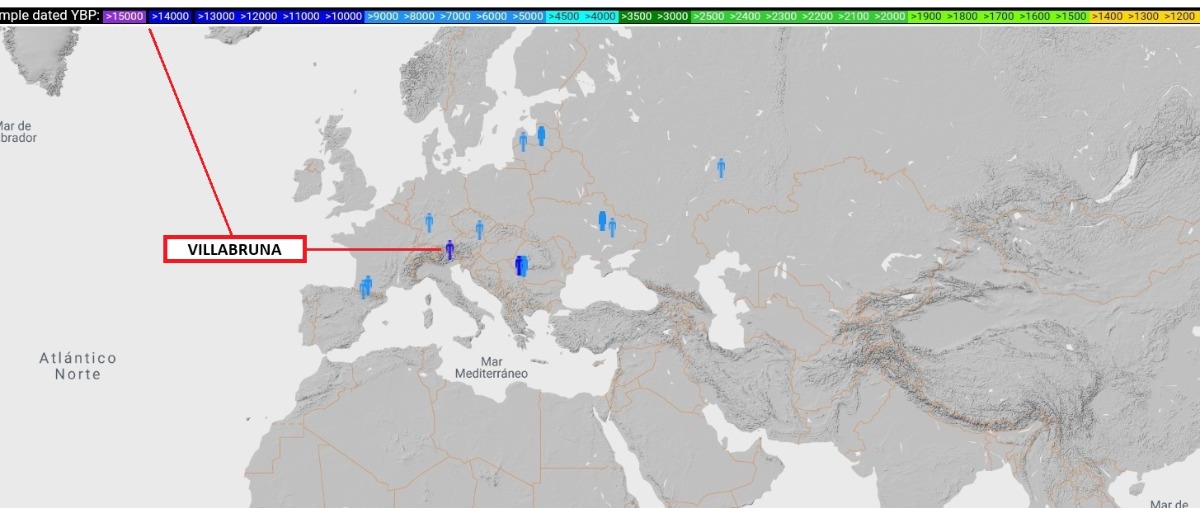
(imagen superior: R1b mas antiguos)
Este nuevo pueblo, al que el Dr. Posth y sus colegas llamaron Oberkassel, se expandió por gran parte de Europa, reemplazando a la antigua población GoyetQ2. El Dr. Posth especuló que otro cambio climático podría explicar esta nueva ola. Hace unos 14.000 años, un pulso de fuerte calentamiento produjo bosques en gran parte de Europa. Es posible que el pueblo de Oberkassel haya sido mejor cazando en los bosques, mientras que los GoyetQ2 se retiraron a medida que las estepas se reducían. Al este, Oberkassel se topó con un nuevo grupo de cazadores-recolectores, que probablemente llegaron de Rusia. Los descendientes de este grupo, que vivían en Ucrania y las regiones circundantes, los científicos llamaron Sidelkino.
En la genética de poblaciones prehistóricas, cuando se habla de los "parientes", nos referimos a otros individuos que forman parte de la misma corriente migratoria y genética. Los Cazadores-Recolectores Occidentales (WHG) o el racimo genético europeo del Epipaleolítico y Mesolítico es el tipo Villabruna. En el macroestudio de 2025 de Reich y Lazaridis utilizan multitud de estos parientes para armar sus modelos matemáticos.
Resulta que los individuos hallados en yacimientos rusos y ucranianos (como Sidelkino o Samara) son "primos hermanos" norteños del linaje Villabruna, y que desempeñaron un papel directo en la formación de los Yamnaya (aportando el componente "norteño" de la estepa). Los genomas de Sidelkino y Samara contienen aproximadamente entre un 25% y un 30% de componente genético tipo Villabruna (WHG). El 70-75% restante de su ADN proviene de los Antiguos Norasiáticos (ANE), un linaje siberiano muy viejo (del que procede el famoso resto de Mal'ta en el lago Baikal).
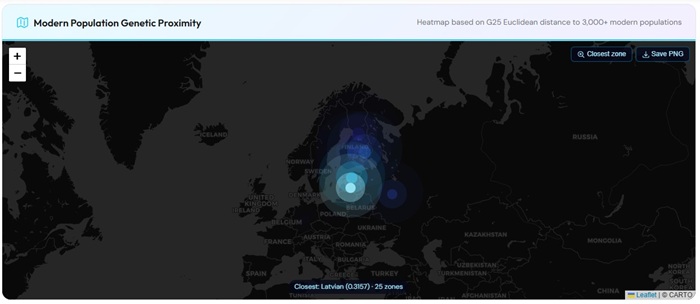
En áreas del Báltico (como el cementerio de Zvejnieki en Letonia), aproximadamente entre hace 7.500 y 6.000 años antes del presente han arrojado perfiles masculinos anclados en este mismo nodo basal. Los hombres posteriores de este mismo entorno, que siguen reteniendo un fortísimo componente genético de cazador occidental (WHG) y linajes estables del tronco R1b, se extienden hasta el siglo V milenio a.C. (alrededor del 4500 a.C.) antes de la llegada masiva de la cultura de la Cerámica Cordada. A dia de hoy, los más cercanos a Villabruna estan en el Baltico.
Los Cazadores-Recolectores de las Puertas de Hierro (Iron Gates HG) del Mesolítico hallados en el Danubio (entre Serbia y Rumanía) son un puente directo, una mezcla perfecta entre el linaje puro de Villabruna y los Cazadores Orientales. En yacimientos mesolíticos a orillas del río Danubio, como Padina, Vlasac y Lepenski Vir (datados entre el 11.000 y el 8.000 antes del presente), se han recuperado numerosos esqueletos masculinos de cazadores-recolectores clasificados formalmente como R-L754 basales.
Los Cazadores-Recolectores de Oberkassel y Loschbour de Alemania y Luxemburgo, aun estando en Europa Occidental, Reich y Lazaridis los usan como gemelos genéticos de Villabruna para medir el nivel de "pureza" de la sustitución de poblaciones durante el Neolítico y la posterior Edad del Bronce.
Lazaridis y Reich demuestran (2025) que el núcleo original que dio origen a los Yamnaya (la población Berezhnovka y el gradiente del Volga) absorbió pequeñas cantidades de ADN de estos cazadores mesolíticos de tipo europeo occidental (Villabruna) antes de expandirse de forma masiva.
Pero en Iberia no hubo grandes oleadas de recién llegados que reemplazaran a los más viejos. Los íberos después de la Edad del Hielo todavía tenían una gran ascendencia del pueblo Fournol que había llegado allí miles de años antes de que avanzaran los glaciares. El pueblo Villabruna se mudó al norte de España, pero agregó su ADN a la mezcla en lugar de reemplazar a los que estaban allí antes. Cuando los primeros agricultores llegaron a Europa desde Turquía hace unos 8.000 años, tres grandes grupos de cazadores-recolectores prosperaron en toda Europa: los Iberos, los Oberkassel y los Sidelkino. Los europeos vivos portan algunos de sus genes, lo que permitió al Dr. Posth y a sus colegas hacer algunas conjeturas fundamentadas sobre la apariencia física de las poblaciones antiguas.
DNA materno.
Este individuo de Villabruna disponía un DNA materno mtDNA U5b2b pertenecía a la cultura gravetiense asociada al refugio interglaciar franco-cantábrico, y emparentado con la "Dama Roja" de la cueva cantábrica del Mirón, cultura que fue reemplazada en iberia y Francia por el solutrense. El análisis del ADN-Y (padre) es un gran desafío, pero el ADNmt (madre) es más abundante, más robusto y resiste mejor los cambios post-mortem que el ADN del cromosoma Y, por eso no se disponen de tantas muestras de ADN-Y antiguas.
Este hallazgo no contradice las buenas condiciones generales de salud y nutrición sugeridas por la estatura, la robustez del esqueleto, los análisis paleo dietéticos y la falta de alteraciones significativas del desarrollo de huesos y dientes.
Las observaciones sobre el desgaste y el micro desgaste dental muestran que la dentición anterior probablemente estuvo involucrada en actividades no alimentarias y en la masticación de materiales fibrosos y resistentes, incluidos grandes contaminantes abrasivos. Mientras que la información sobre los hábitos alimentarios extraída del desgaste dental no es concluyente, el análisis de isótopos estables apunta a una dieta terrestre rica en proteínas animales.
ODONTOLOGÍA HACE 14.000 AÑOS
Un equipo de investigación liderado por Gregorio Oxilia et al. (2015) examinaron el molar humano cariado de Villabruna1. Los resultados muestran que el agujero del diente se procesó con una pequeña hoja de piedra puntiaguda. Por lo tanto, los restos son unos 5.000 años más antiguos que los molares perforados del Neolítico descubiertos en Pakistán. El estudio apareció en la revista Scientific Reports en julio de 2015.
La caries es una de las enfermedades infecciosas más comunes en los países industrializados modernos. Pero los cazadores y recolectores de la Edad de Piedra también tenían un problema de dientes podridos, que se extendió con la introducción de la agricultura y la ganadería y los cambios asociados en la dieta. La evidencia de un tratamiento dental temprano es extremadamente rara. Los hallazgos más antiguos hasta el momento proceden del Neolítico, hace unos 9.000 años. “Pero el molar de Villabruna demuestra que las primeras intervenciones en el tejido dental cariado se produjeron hace al menos 14.000 años, en el Paleolítico tardío”, explica el PD Dr. Ottmar Kullmer, coautor del estudio y experto en la evolución y morfología funcional de los dientes humanos prehistóricos en el Instituto de Investigación Senckenberg de Frankfurt am Main .